
 EN
 DE
 FR
 ES
 PT
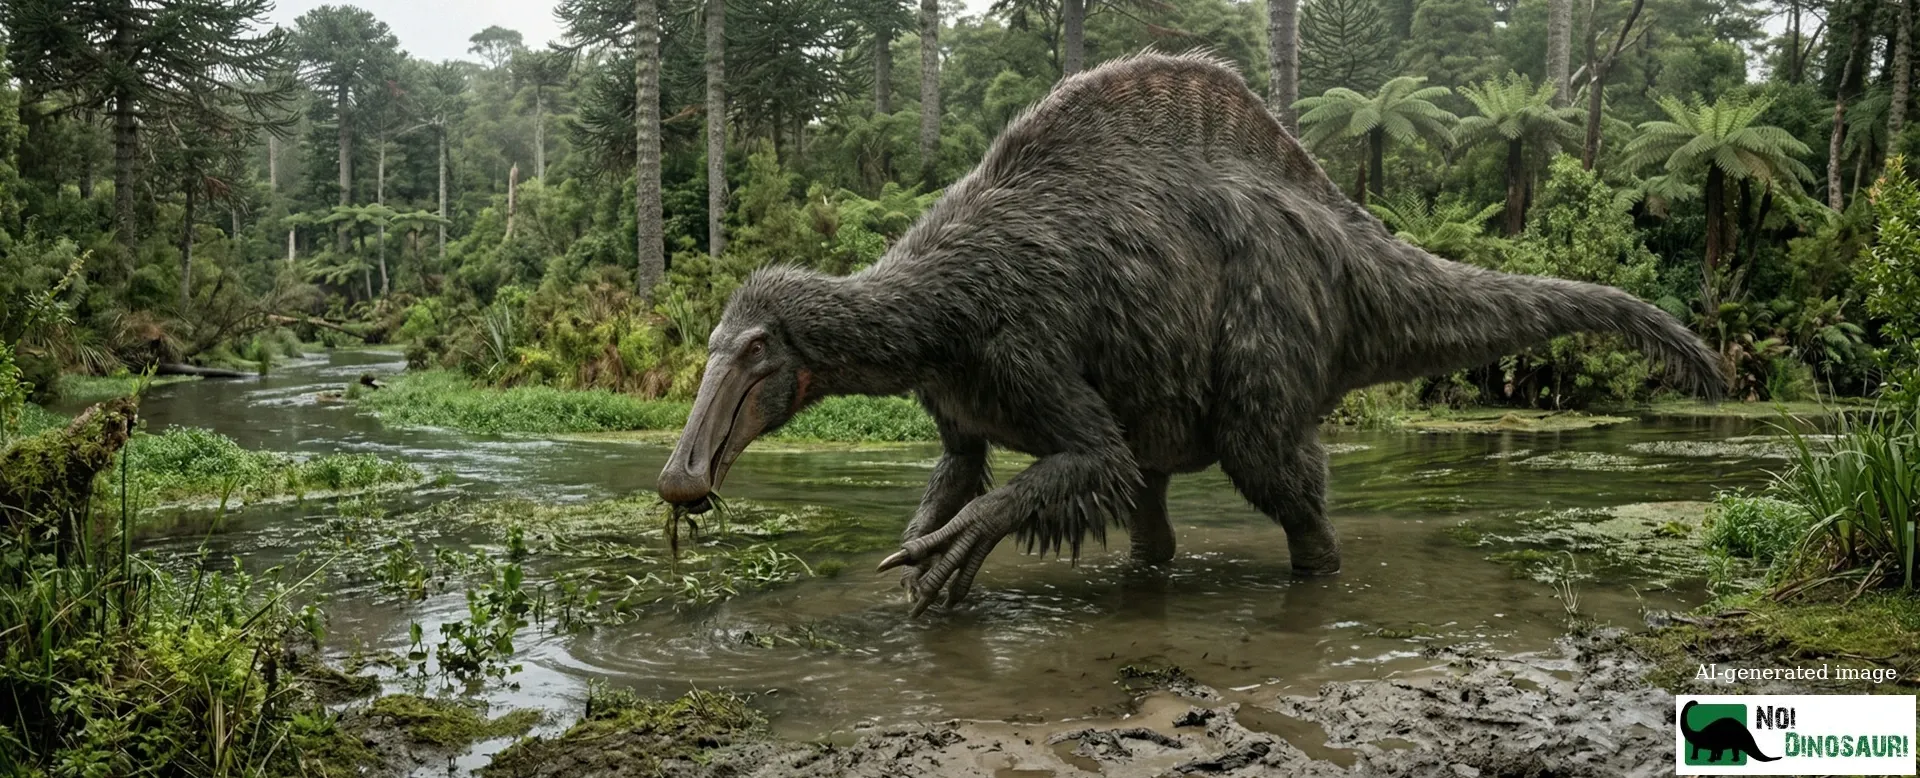
Deinocheirus
Un ibrido da incubo tra un gigantesco struzzo, un dromedario e una mostruosa anatra aliena, che ha riscritto per sempre le regole dell'evoluzione dei dinosauri. Dimenticate il killer da 12 tonnellate della cultura pop: quello che i fossili raccontano davvero è un colosso ancora più assurdo — e ancora più affascinante.
Deinocheirus non è un teropode "generico": appartiene agli Ornithomimosauria, il gruppo dei cosiddetti "dinosauri struzzo", di solito piccoli e velocissimi. Ma dentro questo gruppo occupa una nicchia tutta sua, quella della famiglia Deinocheiridae, insieme al parente stretto Garudimimus (e, più recentemente, Hexing); Beishanlong è invece un ornithomimosauro basale più lontano — i suoi unici "cugini" nel ramo che ha rinunciato alla velocità in cambio di dimensioni colossali.
Deinocheirus: Storia, caratteristiche e curiosità
Per mezzo secolo è stato il fantasma più irrequieto della paleontologia mondiale. Scoperto il 9 luglio 1965 dalla pioniera polacca Zofia Kielan-Jaworowska, durante una leggendaria spedizione polacco-mongola nel deserto del Gobi (sito di Altan Uul III, Mongolia), per decenni ha lasciato dietro di sé solo una coppia di braccia fossili spaventose: lunghe 2,4 metri e armate di artigli falciformi da 25 centimetri, insieme al cinto scapolare e a pochi frammenti di costole e vertebre. Il nome Deinocheirus mirificus (dal greco deinos, "terribile", e cheir, "mano"; il latino mirificus significa "straordinario", "che desta meraviglia") venne coniato nel 1970 da Halszka Osmólska ed Ewa Roniewicz, ma la sua vera natura è rimasta un mistero totale fino al 2014.
In quell'anno, un team guidato da Yuong-Nam Lee descrisse due esemplari, uno dei quali quasi completo, rivelando un animale talmente bizzarro da sembrare un fotomontaggio. La storia del recupero è degna di un film: parte dello scheletro (cranio e piedi) era stata rubata dal sito originale, venduta a un compratore giapponese, poi rivenduta a un collezionista tedesco passando per Cina e Francia. Solo nel 2014, grazie al lavoro investigativo dei paleontologi e alla collaborazione di un museo belga, i pezzi vennero identificati, riuniti al resto dello scheletro e restituiti ufficialmente alla Mongolia nel maggio 2014. Oggi i fossili originali sono esposti al Central Museum of Mongolian Dinosaurs di Ulaanbaatar, mentre i calchi delle iconiche braccia dominano da decenni le sale dell'American Museum of Natural History a New York e del Natural History Museum di Londra.
Due braccia spaventose, armate di artigli falciformi lunghi venticinque centimetri, per mezzo secolo hanno alimentato l'immagine di un mostro invisibile.
Ecco il vero identikit del colosso più assurdo e incompreso del Cretaceo.
Deinocheirus - Caratteristiche distintive
Il becco dell'aspirapolvere preistorico
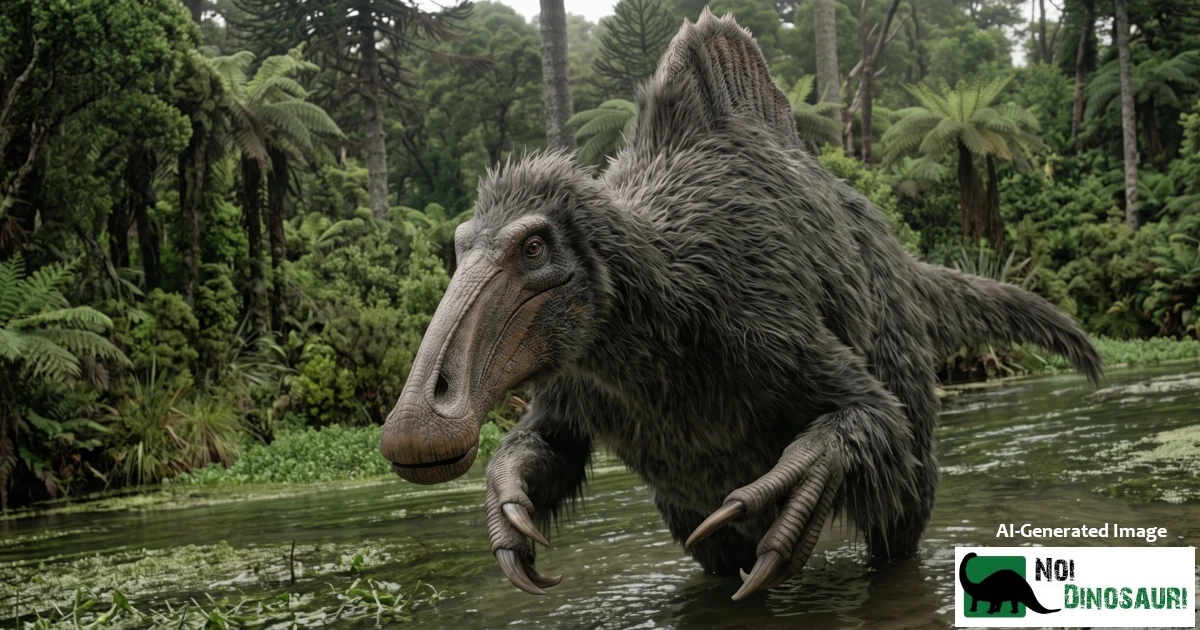
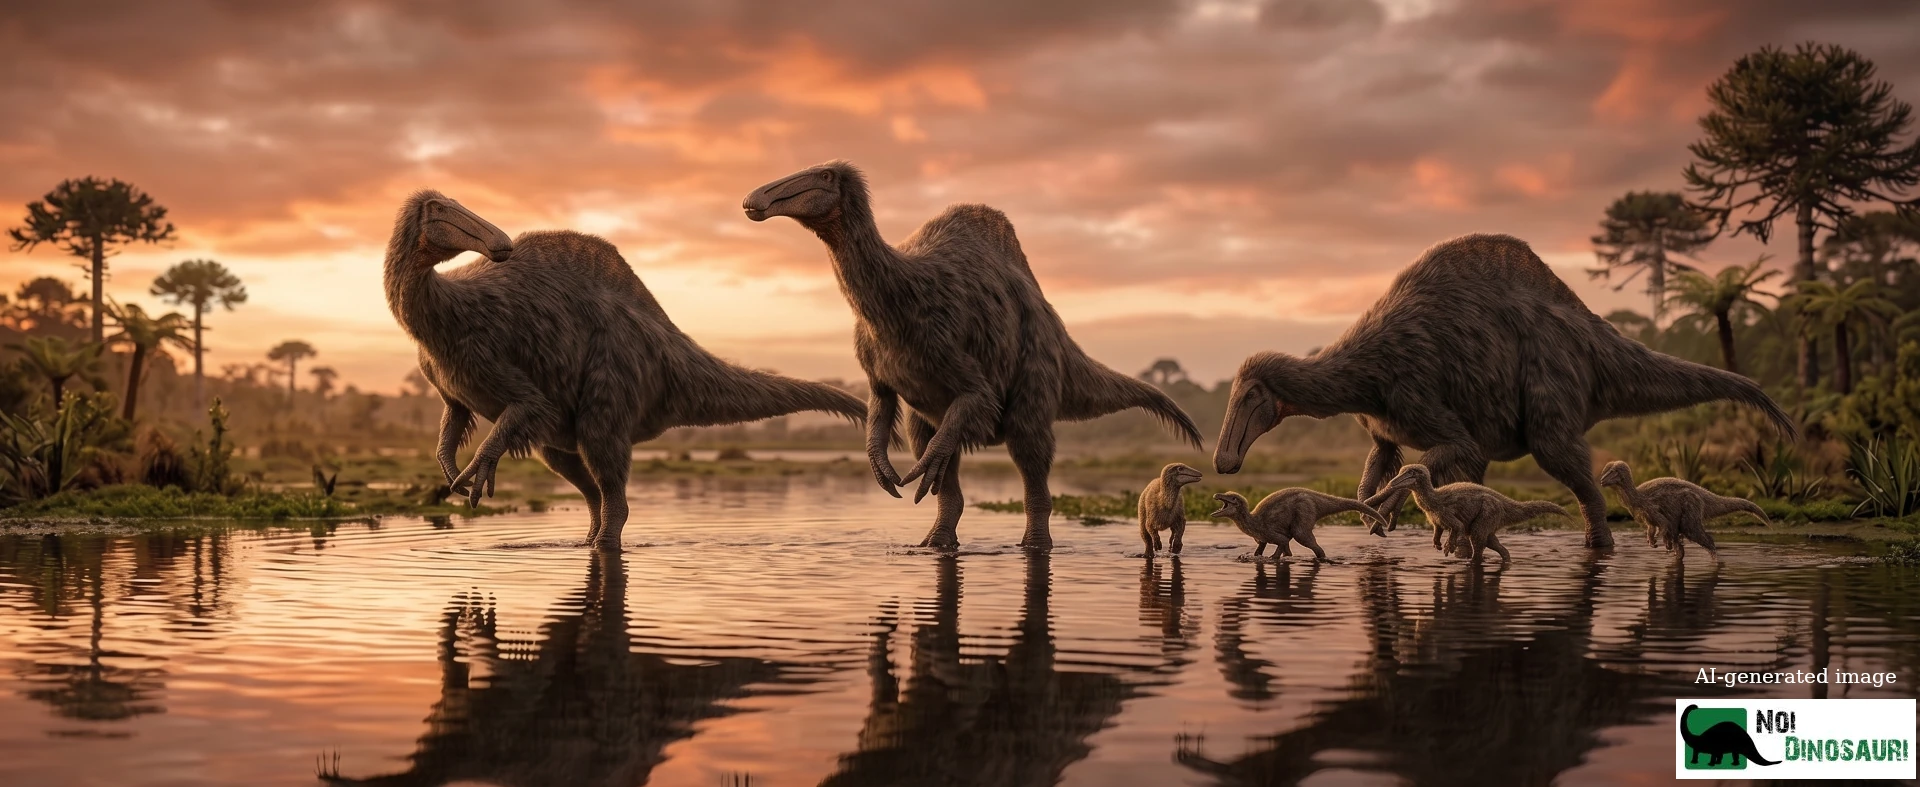
Il cranio, lungo un metro, è un capolavoro di biomeccanica assurda: termina in un becco largo, piatto e spatolato, simile a quello di un'anatra sotto steroidi.
Come lo sappiamo? Le scansioni tomografiche (TAC) del cranio effettuate da Lee et al. nel 2014 rivelano una fitta rete vascolare nella punta delle ossa craniche. Questo dimostra che in vita il becco era ricoperto da una guaina cheratinosa ipersensibile e carnosa, perfetta per dragare i fondi fangosi setacciando fango, alghe e piccoli animali come un gigantesco aspirapolvere industriale.
Una vela a pannelli solari
Sulla schiena, l'animale sfoggiava una gobba o vela imponente, una via di mezzo tra la gobba di un dromedario e la cresta rigida di un bisonte.
Come lo sappiamo? Le misurazioni dirette dei fossili mostrano spine neurali allungate e ispessite all'apice. Una fitta rete di tendini calcificati si ancorava a questa struttura, come i cavi tensori di un ponte strallato, per sorreggere il peso immane dell'addome a botte. Un'area probabilmente pulsante di sangue caldo: forse fungeva da pannello di accumulo termico, o da riserva di grasso, o ancora da elemento di puro display visivo dai colori sgargianti durante la stagione degli amori.
Artigli come rastrelli d'acciaio
Quelle famose braccia letali, in realtà, non servivano per squartare. Gli artigli, pur essendo lunghi come pugnali, sono dritti e smussati sui margini inferiori.
Come lo sappiamo? L'osservazione microscopica e l'analisi 3D delle articolazioni dimostrano l'assenza di usura da combattimento. Venivano usati invece come ganci da demolizione per piegare grossi rami, o come rastrelli inossidabili per strappare tonnellate di vegetazione acquatica dal fondo delle paludi, con la brutale efficienza di un orso grizzly moderno.
Un Ventaglio su trampoli da fango
Le ossa delle dita dei piedi erano corte, larghe e tozze — l'esatto contrario dei veloci dinosauri "struzzo" — funzionando come vere e proprie racchette da neve per non sprofondare nella torba.
Come lo sappiamo? Lo si deduce dalla morfologia stessa dei metatarsi fossili. E sulla coda, un'altra sorpresa: le ultime vertebre erano fuse in una struttura ossea chiamata pigostilo, esattamente come negli uccelli odierni. Attenzione però a non correre troppo con la fantasia: non è mai stata trovata alcuna impronta di piuma diretta su Deinocheirus. Il pigostilo è la prova che l'animale possedeva l'ancoraggio anatomico perfetto per un grande ventaglio di penne timoniere sulla coda non prova, di per sé, un piumaggio su tutto il corpo. Quest'ultimo resta un'inferenza plausibile, basata sul fatto che quasi tutti i parenti ornitomimosauri conosciuti (come Ornithomimus) erano piumati.
Estrapolando le dimensioni dalle sole braccia, per decenni la cultura pop e alcuni scienziati hanno immaginato un super-carnivoro grande quanto o più di un Tyrannosaurus rex. I fossili completi del 2014 hanno smentito la natura di super-predatore agile, ma ne hanno confermato la stazza colossale: Deinocheirus misurava circa 11 metri di lunghezza e raggiungeva un peso di 6,3 – 6,5 tonnellate, il più grande ornitomimosauro mai esistito. Questa stima di massa è considerata affidabile perché calcolata (metodo Campione & Evans) sulla circonferenza minima delle ossa portanti, come il femore, misurate direttamente sui reperti. L'altezza è invece un dato più incerto: le vecchie stime basate solo sulle braccia (anni 2010) parlavano di circa 3,3-3,6 metri al bacino; con lo scheletro completo la cifra resta nello stesso ordine di grandezza, ma a differenza di lunghezza e peso non gode dello stesso consenso solido in letteratura, quindi va presa con più cautela.
Contrariamente alle antiche leggende, non era un killer, ma un colossale onnivoro opportunista. La prova è incisa nella pietra, letteralmente: nella regione gastrointestinale (ventricolo) degli esemplari sono stati rinvenuti oltre 1.400 gastroliti (pietre ingerite volontariamente per triturare le piante fibrose, grandi fino a 8 centimetri) mescolati a scaglie e vertebre semi-digerite di pesci.
Il suo mondo, circa 70 milioni di anni fa (Maastrichtiano, Formazione Nemegt in Mongolia), non era l'attuale deserto sabbioso del Gobi, ma un lussureggiante e umido paradiso verdeggiante, intersecato da delta fluviali e meandri acquitrinosi. Deinocheirus vagava tra fitte foreste di maestose conifere Araucariaceae e sottoboschi di felci, condividendo le fronde con un altro bizzarro erbivoro ad artigli giganti, il Therizinosaurus, e circondato da branchi del dinosauro a becco d'anatra Saurolophus. Il paleontologo americano Thomas Holtz descrisse la sua anatomia come se fosse nata da un improbabile incrocio genetico tra un adrosauro e un piccolo dinosauro struzzo come Gallimimus un ritratto che rende bene l'idea della sua stranezza.
L'unica vera minaccia al suo dominio era il tirannosauride Tarbosaurus bataar, il super-predatore dell'ecosistema. Su alcune costole ventrali (gastrali) fossili di Deinocheirus sono stati trovati segni di morso attribuibili a un grande tirannosauride, probabilmente Tarbosaurus: solchi e striature parallele lasciate dai denticoli serrati. Attenzione a non esagerare la scena: quei morsi non mostrano segni di guarigione, quindi non sono la prova di uno scontro sopravvissuto o di un "duello all'ultimo sangue". Gli stessi paleontologi che li hanno studiati li interpretano come tracce di alimentazione — dovute a predazione o, più probabilmente, a scavenging su una carcassa già morta — e potrebbero anzi spiegare perché lo scheletro originale sia stato ritrovato così disarticolato e disperso.
Video

Video realizzato e distribuito su Youtube da Dinorec e Captain Farrokh.
Approfondisci dettagli sulla riproduzione
In assenza di uova attribuite con certezza al genere Deinocheirus, la scienza estrapola questi dati per filogenesi dai parenti ornitomimosauri: l'esempio più citato è Sinornithomimus, noto da un giacimento con numerosi esemplari giovanili ritrovati insieme, interpretato come prova di comportamento gregario tra i giovani (più che di vere e proprie colonie di nidificazione, che restano un'inferenza indiretta).
Crescita Accelerata. I cuccioli erano quasi certamente precociali (nidifughi): uscivano dall'uovo probabilmente ricoperti di denso piumino, già pronti a camminare e cercare riparo. Esistono dati istologici preliminari (Lee et al., 2014), ma manca ancora uno studio dettagliato sulla traiettoria di crescita individuale basato su molti esemplari di età diverse. Per analogia con altri ornitomimosauri, i cui tessuti ossei mostrano una crescita giovanile rapidissima seguita da un netto rallentamento in età adulta, è plausibile ipotizzare una traiettoria simile anche per questo gigante, ma resta appunto un'estrapolazione, non un dato diretto.
Approfondisci dettagli sull' estinzione
Il colpo di grazia derivò dallo stesso collasso ecosistemico che spazzò via tutti i dinosauri non aviani: l'impatto dell'asteroide nel Golfo del Messico combinato, come evidenziato da studi recenti (Renne et al., 2015), con i devastanti cambiamenti climatici legati ai Trappi vulcanici del Deccan (India). L'oscuramento globale bloccò la fotosintesi nel delta del Nemegt. Per un colosso onnivoro da oltre 6 tonnellate, che doveva procurarsi ogni giorno enormi quantità di cibo, la morte del sistema fluviale e vegetale fu una condanna a morte rapida per inedia. La nicchia del "mega-onnivoro brucatore acquatico/terrestre" fu lasciata drammaticamente vuota in Asia, e fu colmata milioni di anni dopo solo dall'evoluzione dei mammiferi giganti.
Curiosità - Lo sapevi che?
Immagina questo colosso da 6 tonnellate che, durante la stagione degli accoppiamenti, apriva e scuoteva sulla coda un maestoso ventaglio piumato ancorato al suo pigostilo, in una gigantesca parata nuziale silenziosa in mezzo alle paludi del Nemegt. Il suo punto debole più grande, però, restava la velocità: biomeccanicamente, sul fango non poteva muoversi più veloce di un elefante al piccolo trotto, circa 15 km/h.
Un gigante a sangue caldo, freddo, o "via di mezzo"?
Qui si apre uno dei dibattiti più aperti della paleontologia moderna, e Deinocheirus ne è un caso da manuale. Per decenni i dinosauri sono stati divisi in due categorie nette: ectotermi (a sangue "freddo", come i rettili attuali, che regolano la temperatura corporea soprattutto dall'esterno) o endotermi (a sangue "caldo", come uccelli e mammiferi, che la producono e mantengono internamente). Il problema è che non esiste un modo diretto per misurare il metabolismo di un animale estinto: si può solo dedurlo da indizi indiretti — il ritmo di crescita ricavato dagli anelli ossei, i rapporti isotopici nei denti, la struttura vascolare dell'osso — e questi indizi, a seconda del metodo usato, danno risposte diverse.
Nel 2014 un influente studio (Grady et al., Science) ha confrontato i tassi di crescita di decine di specie di dinosauri con quelli di animali attuali a metabolismo noto, concludendo che i dinosauri fossero "mesotermi": né pienamente a sangue caldo né a sangue freddo, ma in una via di mezzo condivisa oggi da pochi animali insoliti come il tonno o l'echidna. Questa conclusione è stata però contestata l'anno successivo da altri ricercatori, che hanno individuato problemi statistici nel metodo e sostengono invece che molti dinosauri fossero endotermi quasi quanto i mammiferi placentati moderni. La discussione, in altre parole, non si è mai davvero chiusa.
Per un gigante da oltre 6 tonnellate come Deinocheirus la domanda si complica ulteriormente: un corpo così grande ha una superficie molto piccola rispetto al proprio volume, e quindi disperde calore lentissimamente. Questo fenomeno, chiamato gigantotermia, permette a un animale enorme di mantenere una temperatura interna alta e stabile quasi "per inerzia fisica", indipendentemente dal proprio metabolismo di base — un po' come succede oggi alle tartarughe liuto. Per questo, distinguere se Deinocheirus fosse davvero un endotermo attivo o "solo" un gigante che tratteneva passivamente il proprio calore resta, allo stato attuale, una domanda aperta.
Musei che ospitano fossili di: Deinocheirus
Elenco dei Musei e link ai siti web
Natural History Museum of Mongolia (precedentemente Central Museum of Mongolian Dinosaurs)
Ulaanbaatar, Mongolia
Cosa vedere: Scheletro completo originale di Deinocheirus (esemplari MPC-D 100/127 e MPC-D 100/128), inclusi i fossili rimpatriati nel 2014.
LINK: Informazioni sul museo
American Museum of Natural History (AMNH)
New York, USA
Cosa vedere: Replica delle enormi braccia fossili (circa 2.4 metri) al 4° piano, nella Hall of Saurischian Dinosaurs.
Hall of Saurischian Dinosaurs
KIGAM Geological Museum (Korea Institute of Geoscience and Mineral Resources)
Daejeon, Corea del Sud
Cosa vedere: Ricostruzione 3D stampata a grandezza naturale del cranio e scheletro completo in scala 1:4.
Sito ufficiale del museo
CosmoCaixa Barcelona
Barcellona, Spagna
Cosa vedere: Ha ospitato l'olotipo (MPC-D 100/18) nella mostra temporanea "Dinosaures. Tresors del desert de Gobi".
Sito ufficiale
Natural History Museum
Londra, Regno Unito
Cosa vedere: Artigli fossili di Deinocheirus nella galleria dei Dinosauri.
Dinosaurs Gallery
Paleontological Museum, University of Oslo
Oslo, Norvegia
Cosa vedere: Replica delle braccia fossili.
Jurassic Park Institute Wiki
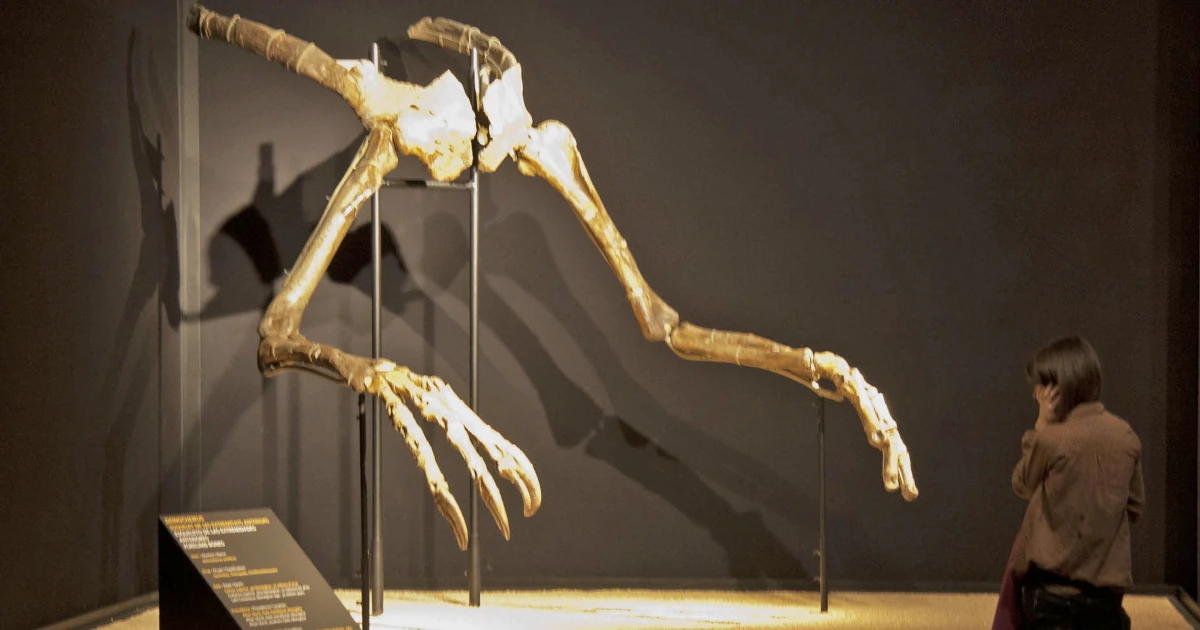
Di Jordi Payà from Barcelona, Catalonia - IMG_1241'Uploaded by FunkMonk, CC BY-SA 2.0, https://commons.wikimedia.org/w/index.php?curid=13533888
Elenco e link alle fonti
Lee et al. (2014) - Nature - https://www.nature.com/articles/nature13874 - PubMed: https://pubmed.ncbi.nlm.nih.gov/25337880/
Osmólska & Roniewicz (1970) - Palaeontologia Polonica - Disponibile attraverso database accademici come Palaeontologia Polonica Vol. 21, pp. 5-19 - Citato in: https://en.wikipedia.org/wiki/Deinocheiridae
Campione et al. (2014) - Methods in Ecology and Evolution - https://besjournals.onlinelibrary.wiley.com/doi/10.1111/2041-210X.12226 - Repository Smithsonian: https://repository.si.edu/handle/10088/25281
Bell, Currie & Lee (2012) - Cretaceous Research - https://www.sciencedirect.com/science/article/abs/pii/S0195667112000572 - ResearchGate: https://www.researchgate.net/publication/257047934
Grady et al. (2014) - Science - https://www.science.org/doi/10.1126/science.1253143 - PubMed: https://pubmed.ncbi.nlm.nih.gov/24926017/
- PDF: https://www.scienceintheclassroom.org/sites/default/files/research-papers/1268.full_.pdf - Commenti critici (2015): https://www.science.org/doi/10.1126/science.1260061
Renne et al. (2015) - Science - https://www.science.org/doi/10.1126/science.aac7549 - PubMed: https://pubmed.ncbi.nlm.nih.gov/26430116/ - UC Berkeley: https://escholarship.org/content/qt5fk799n8/qt5fk799n8.pdf
Natural History Museum di Londra - https://www.nhm.ac.uk/discover/dino-directory/deinocheirus.html
Paleobiology Database - https://paleobiodb.org/classic/checkTaxonInfo?taxon_no=38550 - Record Deinocheirus mirificus (Taxon 38550), Nemegt Basin
Nota: Alcuni articoli potrebbero richiedere un abbonamento istituzionale o l'acquisto per l'accesso completo al testo integrale.