
 EN
 DE
 FR
 ES
 PT
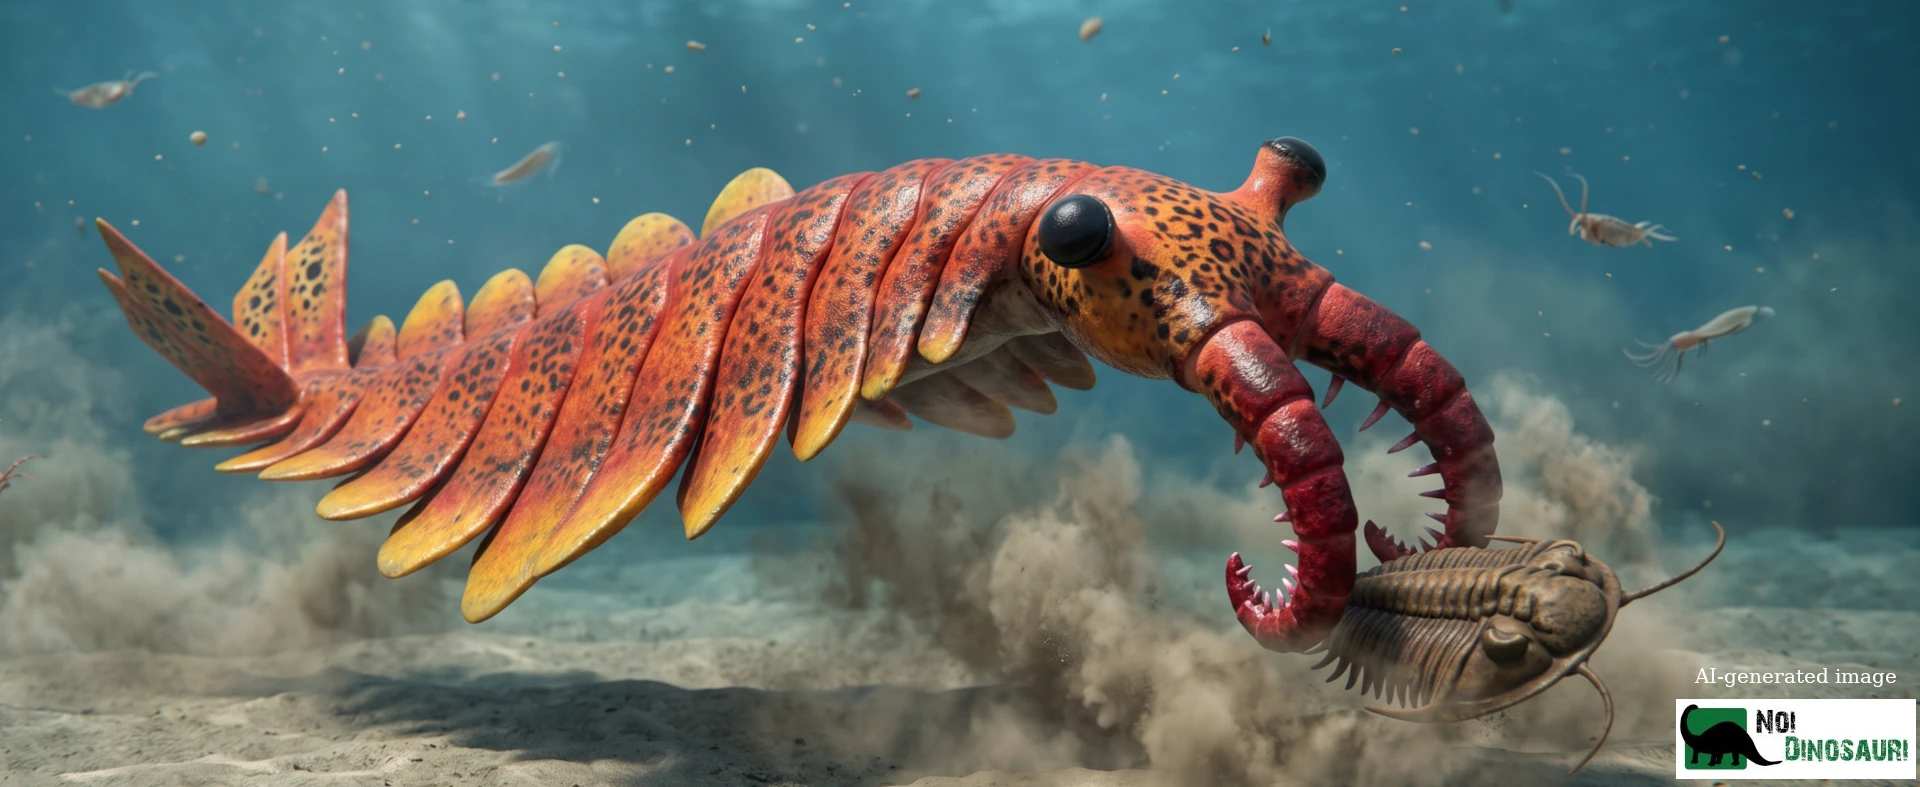
Anomalocaris
Cinquecento milioni di anni fa, in un oceano alieno ancora privo di vertebrati predatori, il ruolo di superpredatore non apparteneva a uno squalo, ma a una creatura che sembrava assemblata con i pezzi di scarto dell'evoluzione. L'Anomalocaris è un radiodonte, un artropode basale marino estinto (gruppo radicale, o stem group), nonché uno dei primi grandi superpredatori (apex predators) nella storia della vita sulla Terra.
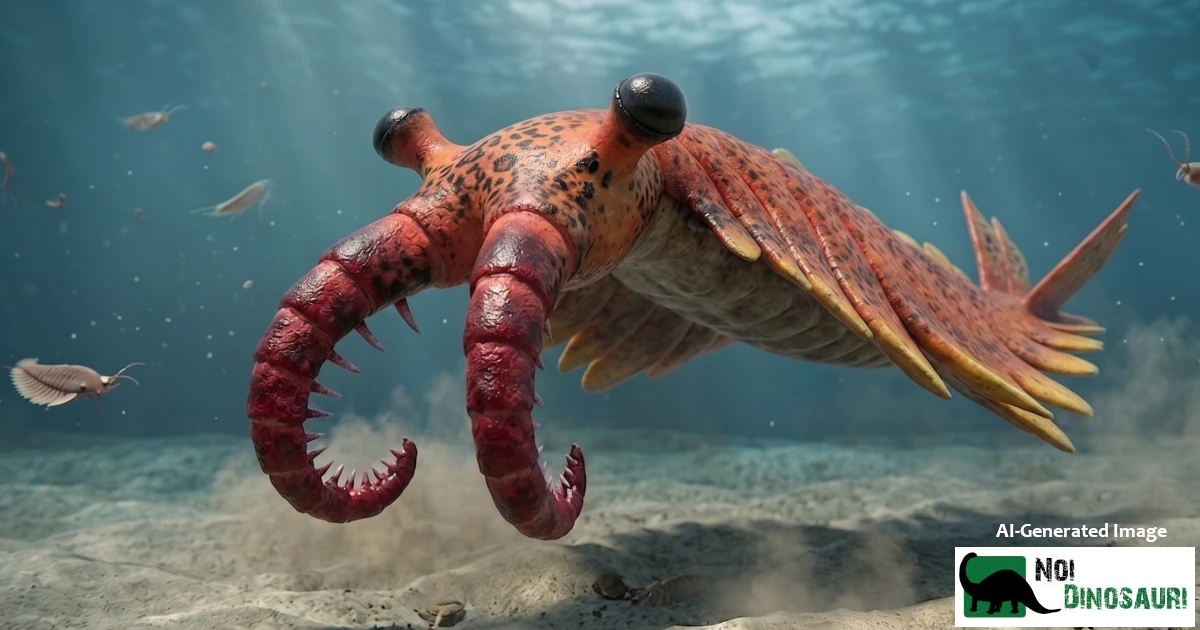
Anomalocaris: Storia, caratteristiche e curiosità
Il nome Anomalocaris significa letteralmente "gambero anomalo", e la sua storia accademica è un puzzle durato quasi un secolo. Nel 1892, il paleontologo Joseph Frederick Whiteaves ne scoprì un'appendice isolata, scambiandola per l'addome di un crostaceo. Pochi anni dopo, Charles Doolittle Walcott trovò la bocca circolare (classificandola come una medusa, Peytoia) e il corpo (scambiato per una spugna, Laggania). Fu solo nel 1985 che i paleontologi Harry Whittington e Derek Briggs, lavorando sui fossili degli Scisti di Burgess (Burgess Shale), unirono letteralmente i pezzi, svelando un unico, bizzarro mostro. Oggi, i reperti più spettacolari sono esposti al Royal Ontario Museum (Toronto, Canada) e allo Smithsonian National Museum of Natural History (Washington, USA).
Pattugliando gli oceani cambriani di oltre 500 milioni di anni fa, l'Anomalocaris dominava un mondo primordiale grazie a un formidabile mix di anatomia aliena e idrodinamica. Lontano dall'essere un brutale e goffo frantumatore di corazze, questo superpredatore univa l'eleganza fluttuante di una manta a un insolito apparato boccale triradiale, perfettamente specializzato per risucchiare prede dal corpo molle. Guidato da enormi occhi composti peduncolati dotati di una risoluzione ottica senza precedenti, l'Anomalocaris si muoveva veloce e letale, rappresentando il primo vero capolavoro di ingegneria visiva e biomeccanica nella storia dell'evoluzione marina.
Anomalocaris - Caratteristiche distintive
Gli Occhi da Insetto Spaziale
Questa creatura sfoggiava una visione eccezionale per un predatore in un mondo di prede quasi cieche. Aveva enormi occhi composti peduncolati; immagina la risoluzione ottica del sensore di una fotocamera moderna rispetto a una rudimentale polaroid.
Come lo sappiamo? Nel 2011, John Paterson e colleghi hanno analizzato fossili eccezionalmente conservati provenienti dalle Emu Bay Shale in Australia, scoprendo che ogni occhio contava oltre 16.000 lenti esagonali, un potere risolutivo — un'acutezza visiva — paragonabile a quello dei moderni predatori come le libellule. Alla luce del sole cambriano, questi occhi dovevano apparire come cupole iridescenti e metalliche.
La Tagliola a Fette d'Ananas
La bocca ventrale dell'animale aveva un aspetto complessivo simile a una fetta d'ananas, ma la sua vera architettura si è rivelata più sorprendente del previsto: non il classico anello tetraradiale di 32 piastre uguali, tipico di altri radiodonti come Peytoia e Hurdia, bensì un cono triradiale con sole tre placche grandi e un numero variabile di placche medie e piccole, prive di vere articolazioni per una chiusura totale.
Come lo sappiamo? L'analisi al microscopio elettronico e i modelli 3D dei coni orali (Daley e Bergström, 2012) hanno dimostrato che questa architettura insolita rende più plausibile un'alimentazione per suzione che un morso netto. Uno studio biomeccanico più recente (Bicknell et al., 2023), basato su una ricostruzione tridimensionale dell'animale a partire da fossili eccezionalmente conservati, ha confermato che sia la bocca sia le appendici frontali erano troppo deboli per generare la forza necessaria a spezzare un esoscheletro mineralizzato: Anomalocaris era costruito per la velocità e per le prede molli, non per frantumare gusci.
Danza di Lame Subacquee
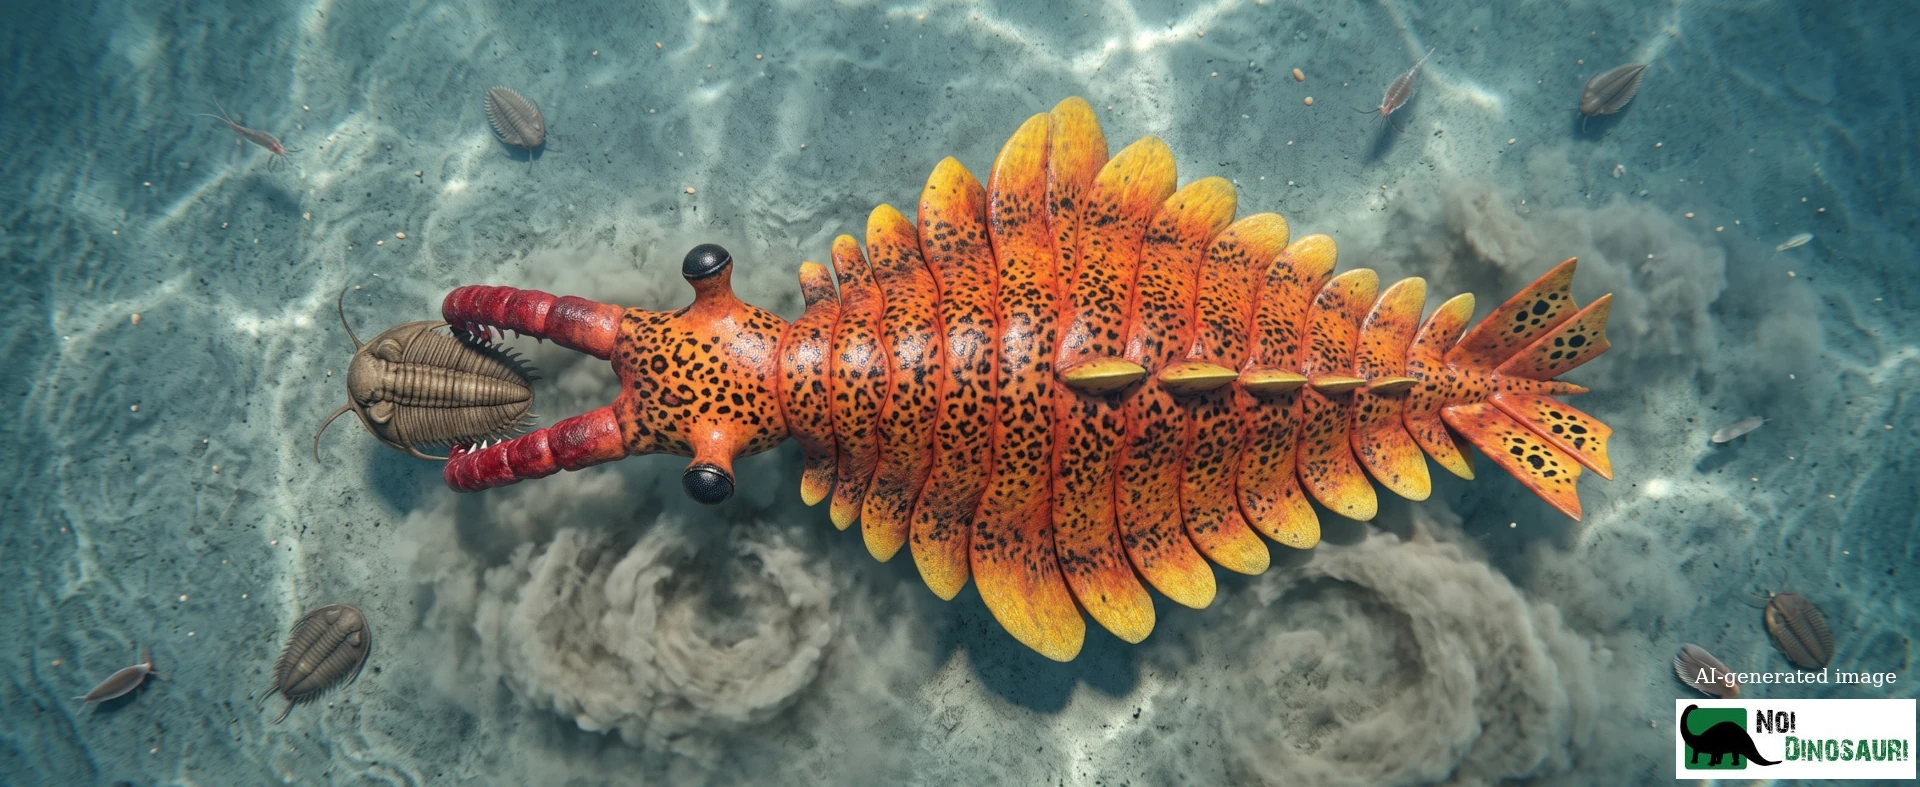
Per muoversi, l'Anomalocaris non usava pinne caudali, aveva però tre paia di pinne dorsali e una pinna caudale ventrale che fungevano da stabilizzatori. . Il movimento ondulatorio di questi lobi era simile alla fluttuazione aggraziata, quasi ipnotica, di una moderna manta, fendendo l'acqua con una texture epidermica liscia, priva della rigidità chitinosa dei veri crostacei.
Come lo sappiamo? Diverse simulazioni di fluidodinamica computazionale applicate ai modelli morfologici dell'animale hanno confermato che questo movimento garantiva una stabilità eccezionale e una notevole velocità di crociera per l'epoca.
I documentari dei primi anni 2000 amavano dipingerlo come un leviatano lungo due metri. Sfatiamo il mito: le prime stime, basate sul rapporto tra le grandi appendici prensili isolate e la lunghezza corporea, avevano già ridimensionato l'animale a 50-60 centimetri per gli esemplari più eccezionali, ma le analisi morfologiche più recenti e complete su esemplari interi (Daley & Edgecombe, 2014) sono andate oltre, portando la lunghezza corporea massima nota di Anomalocaris canadensis, escluse appendici e coda, a circa 34-38 centimetri. In pratica, un esemplare adulto era lungo grosso modo quanto un gatto di piccola taglia (corpo di 34–38 cm, escluse appendici e coda: un gigante assoluto per gli standard del suo tempo, ma ben lontano dal leviatano da b-movie. Non esistono stime affidabili sul peso, ma la corporatura leggera suggerisce pochi etti.
Controintuitivamente, la "macchina di morte" cambriana cacciava prede molli. Le sue appendici spinose frontali arpionavano il plancton, articolati in 14 segmenti, ciascuno munito di spine tridenti, questi appendici funzionavano come reti per avvolgere prede molli, gelatinoso o vermi marini, portandoli alla bocca centrale.
Viveva in quello che un tempo era il continente Laurentia (oggi Nord America e Canada), nuotando in mari tropicali e poco profondi alla base di gigantesche scogliere formate non da coralli, ma da cianobatteri, spugne come la Vauxia e alghe come Margaretia. Resti attribuiti a radiodonti affini sono noti anche in Australia (Emu Bay Shale) e in Cina (Chengjiang), indicando una distribuzione globale. Condivideva le acque con creature altrettanto aliene: predava organismi non corazzati e condivideva la nicchia ecologica con il bizzarro Opabinia(dotato di cinque occhi e una proboscide) e con l'enigmatica Wiwaxia, un lofotrocozoo rivestito di scaglie non mineralizzate, la cui parentela resta contesa fra molluschi e anellidi.
Approfondisci dettagli sulla riproduzione
Non possediamo fossili di uova né "nursery" radiodonti. Tuttavia, per via della sua stretta parentela con il gruppo staminale degli euartropodi (insetti, crostacei), l'ipotesi dominante è che fosse oviparo.
Larve alla Deriva
In assenza di evidenze dirette di cure parentali (comportamento raro, anche se non impossibile, nei predatori basali), si ritiene che i neonati nascessero in forma larvale, fluttuando nel plancton. Una volta raggiunta una dimensione critica, avrebbero sviluppato i lobi natatori per passare a una caccia pelagica attiva.
Approfondisci dettagli sull' estinzione
La comunità scientifica ipotizza che la sua scomparsa sia stata legata a un radicale riassetto ecologico, tra le cause oggi più accreditate: l'esplosione evolutiva di prede con esoscheletri calcificati (troppo duri per la sua bocca) e la competizione con veri artropodi e i primissimi pesci corazzati. L'ordine dei radiodonti, del resto, era molto più ampio di un singolo genere: annoverava cugini come Amplectobelua e Lyrarapax, predatori del biota cinese di Chengjiang, e coinquilini dello stesso Burgess Shale come Hurdia. Va inoltre precisato che l'ordine non si estinse del tutto nel Cambriano: oltre ai filtratori giganti dell'Ordoviciano come Aegirocassis (Van Roy et al., 2015), un radiodonte è noto anche nel Devoniano (Schinderhannes bartelsi, ~400 milioni di anni fa). La nicchia di super-predatore lasciata vuota da Anomalocaris venne presto occupata dagli enormi cefalopodi nautiloidi e, successivamente, dagli scorpioni di mare (euripteridi).
Curiosità - Lo sapevi che?
Per decenni lo abbiamo immaginato mentre frantumava i durissimi carapaci dei Trilobiti. Eppure, lo studio biomeccanico di Bicknell e colleghi (2023) ha dimostrato che sia le placche della bocca sia le appendici frontali erano intrinsecamente deboli. Sotto sforzo, riuscivano a generare appena la forza necessaria a lacerare tessuti molli, ma non a frantumare esoscheletri. Se l'Anomalocaris avesse addentato il guscio di un trilobite corazzato adulto, le sue placche orali si sarebbero fratturate. T-Rex del Cambriano" era limitato a catturare e succhiare prede dal corpo molle.
Per gran parte del Novecento, Anomalocaris è stato un vero e proprio cestino tassonomico: qualsiasi appendice isolata di radiodonte, ovunque nel mondo venisse trovata, finiva etichettata sotto questo nome, semplicemente perché era il più noto. Solo le revisioni tassonomiche degli ultimi anni hanno "ripulito" il genere, restituendo un'identità propria a diverse specie prima confuse tra loro e lasciando Anomalocaris canadensis come specie tipo pienamente riconosciuta.
Elenco e link alle fonti
Whittington & Briggs (1985) - The largest Cambrian animal, Anomalocaris... - https://doi.org/10.1098/rstb.1985.0073 (Philosophical Transactions of the Royal Society B)
Paterson et al. (2011) - Acute vision in the giant Cambrian predator Anomalocaris... https://doi.org/10.1038/nature10146 (Nature)
Daley & Bergström (2012) - The oral cone of Anomalocaris is not a classic "peytoia" https://doi.org/10.1007/s00114-011-0865-1 (Naturwissenschaften)
Daley & Edgecombe (2014) - Morphology of Anomalocaris canadensis from the Burgess Shale https://doi.org/10.1666/13-032 (Journal of Paleontology)
Bicknell et al. (2023) - Raptorial appendages of the Cambrian apex predator Anomalocaris canadensis are built for soft prey and speed https://doi.org/10.1098/rspb.2022.2199 (Proceedings of the Royal Society B)
Van Roy et al. (2015) - Anomalocaridid trunk limb homology revealed by a giant filter-feeder... https://doi.org/10.1038/nature14256 (Nature)